
一个氨基酸替换,就能把蛋白的 pI 挪动整整一个 pH 单位。 每一道糊掉的 2D 胶、每一根失败的离子交换柱、每一条在 pH 8.3 死活转不上去的怪异 western blot 条带,背后都是这个事实。蛋白质等电点计算器(pI)的做法是:把每个可解离基团的净电荷加总,再用二分法找到净电荷为零的那个 pH,得到理论 pI;pKa 集用的是 Bjellqvist 表,二分法也是 Biopython 的 IsoelectricPoint 用的那套。这篇指南讲的是哪些 pKa 值真正在起作用,二分法在哪儿收敛、在哪儿来回震荡,以及为什么忽略 N 端和 C 端残基会让结果偏。
计算器到底在加什么
在生理 pH 范围内,每个氨基酸带有零个、一个或两个可滴定基团,计算器把每一个都当作独立的 Henderson-Hasselbalch 位点,各有自己的 pKa。默认用的 Bjellqvist 集就是简化版 ExPASy 表:N 端 7.5、C 端 3.55、Lys 10.0、Arg 12.0、His 5.98、Asp 4.05、Glu 4.45、Cys 9.0、Tyr 10.0。其余残基(Ala、Gly、Val、Leu、Ile、Pro、Phe、Trp、Met、Ser、Thr、Asn、Gln)只贡献分子量求和用的残基质量,在 pH 0 到 14 之间不产生净电荷。
于是 pH 为 p 时的净电荷公式是:
Q(p) = sum_over_basic( 1 / (1 + 10^(pKa - p)) )
     - sum_over_acidic( 1 / (1 + 10^(p - pKa)) )
     + (N_term_charge - C_term_charge)
pH 7.4 时,一个典型的 300 残基可溶蛋白净电荷落在 ±5 到 ±20, pI 就是 Q(p) 穿过零点处的 pH。在 pH 0 到 14 之间做二分,容差 0.001,通常 30 到 40 次迭代收敛。
二分法为什么会落在错误的平台上
数学意义上的 pI 是唯一的:在任何单个电离步骤内 Q(p) 都单调,pH 0 到 14 之间只有一个零点。真正的风险在于,计算器只报告一个保留两位小数的 pI,而这个值可能落在收敛带边缘那段被截断的平台上。有两种情况会踩到这个截断:
1. 多两性蛋白(polyamphoridine):序列电荷严重不对称,碱性基团和酸性基团各自聚在不同结构域里。净电荷曲线在 pI 附近变平,二分法可能在 0.01 个 pH 宽的带子里来回震荡 50 多次迭代才触发容差退出。报出来的 pI 是对的,只是收敛日志里看不到提前退出;换成 0.0001 的容差重跑,四位小数结果一样,0.001 那次的结果早已落在舍入噪声之内。
2. 成二硫键的 Cys 对:计算器把每个 Cys 都独立按 pKa 9.0 处理,可真实的二硫键会让硫醇盐形式彻底消失。序列里有 4 个 Cys 组成两对二硫键时,计算器在 pH 9 附近会多算 4 个负电荷,把 pI 往下压 0.2 到 0.5 个 pH 单位。Bjellqvist 集不带二硫键检测,实用的补救办法是算理论 pI 时把成对的 Cys 换成 Ser(不贡献电荷),再在分子量求和里把残基质量加回来。
决定 pI 的三个 pKa 值
90% 的可溶蛋白,pI 只由三个 pKa 值决定:Glu 4.45、Asp 4.05、Lys 10.0。原因如下:
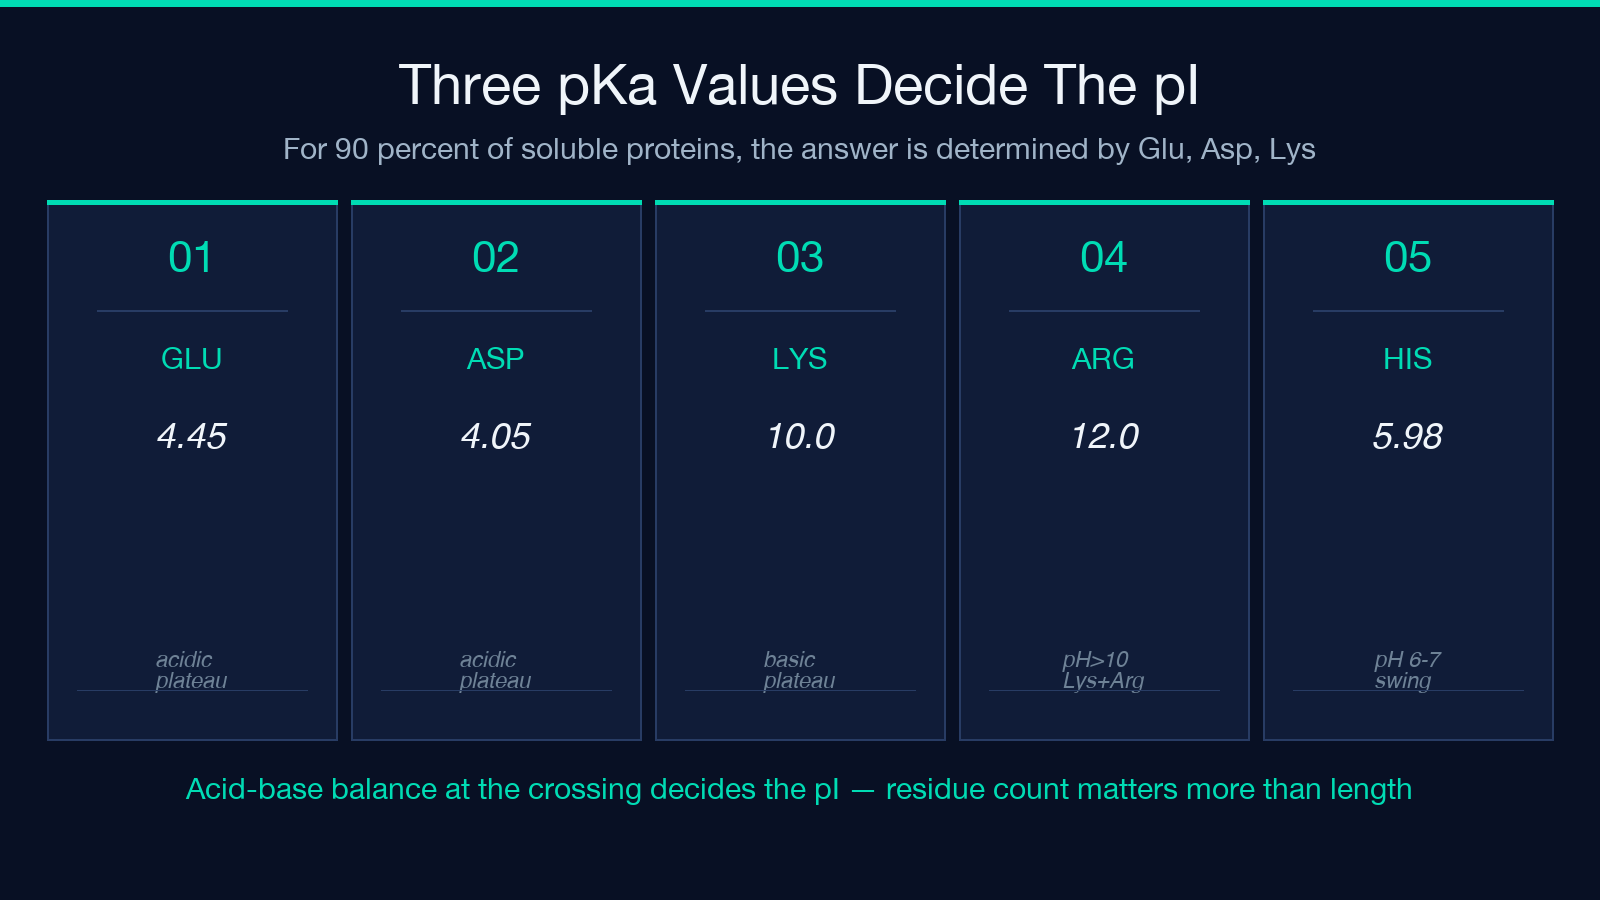
- 酸性平台(pH 3 到 5)由 Glu 和 Asp 的去质子化主导。一个有 15 个 Glu、12 个 Asp 的蛋白,会在 pH 4.2 附近形成一个明显的酸性肩;整段区间里,碱性残基都以质子化形式存在。
- 碱性平台(pH 9 到 12)由 Lys(pKa 10.0)和 Arg(pKa 12.0)主导。Lys 一旦起来,His(pKa 5.98)和 Tyr(pKa 10.0)就太弱,影响不了碱性一侧。
- 零点出现在酸式去质子化的累计量等于碱式质子化的累计量之处。上面那个 15 Glu / 12 Asp / 20 Lys / 10 Arg 的蛋白,大约落在 pH 8.4。
预测的 pI 与文献实验值差了 0.5 个 pH 单位以上,第一件要查的事就是 Glu/Asp 的个数:一个残基看错,答案就能偏 0.3。
N 端和 C 端残基怎样撬动结果
N 端(pKa 7.5)和 C 端(pKa 3.55)被当作固定电荷,不随链长变化,也就是说它们对净电荷总和的贡献按分子计、不按残基计。50 残基的肽里,这一份占 2%;500 残基的蛋白里只占 0.2%。这个简化成立,是因为 Bjellqvist 集把 N 端残基身份带来的 pKa 偏移取了个平均;ExPASy 的 Compute pI 用一张更细的末端残基表,N 端是 Lys(pKa 7.7)还是 Pro(pKa 6.7),结果会差 ±0.1 个 pH。
实用结论:日常实验规划(柱缓冲液 pH、IEF 胶条 pH 范围)用简化 Bjellqvist 集就够,相对 ExPASy Compute pI 的偏差在 ±0.3 个 pH 单位以内。要写进论文引用,就把同一条序列丢进 Biopython 的 IsoelectricPoint 类或 ExPASy 的网页工具跑一遍,两个值一起报。
生理 pH 下的净电荷,以及它对溶解度的意义
计算器在给出 pI 的同时,也给出 pH 7.4 下的净电荷,这一个数字是中性 pH 下溶解度最好的预测指标。Q(7.4) 大于 +10 的蛋白在 pH 7.4 下溶解性很好;Q(7.4) 小于 -10 的已经在临界线上,可能析出。pH 7.4 附近有影响的基团里,只有 His(pKa 5.98)在生理区间内变化陡峭:pH 从 6.5 移到 7.5,一个含 30 个 His 的蛋白净电荷会变约 +3。
规划离子交换层析时,规则是:
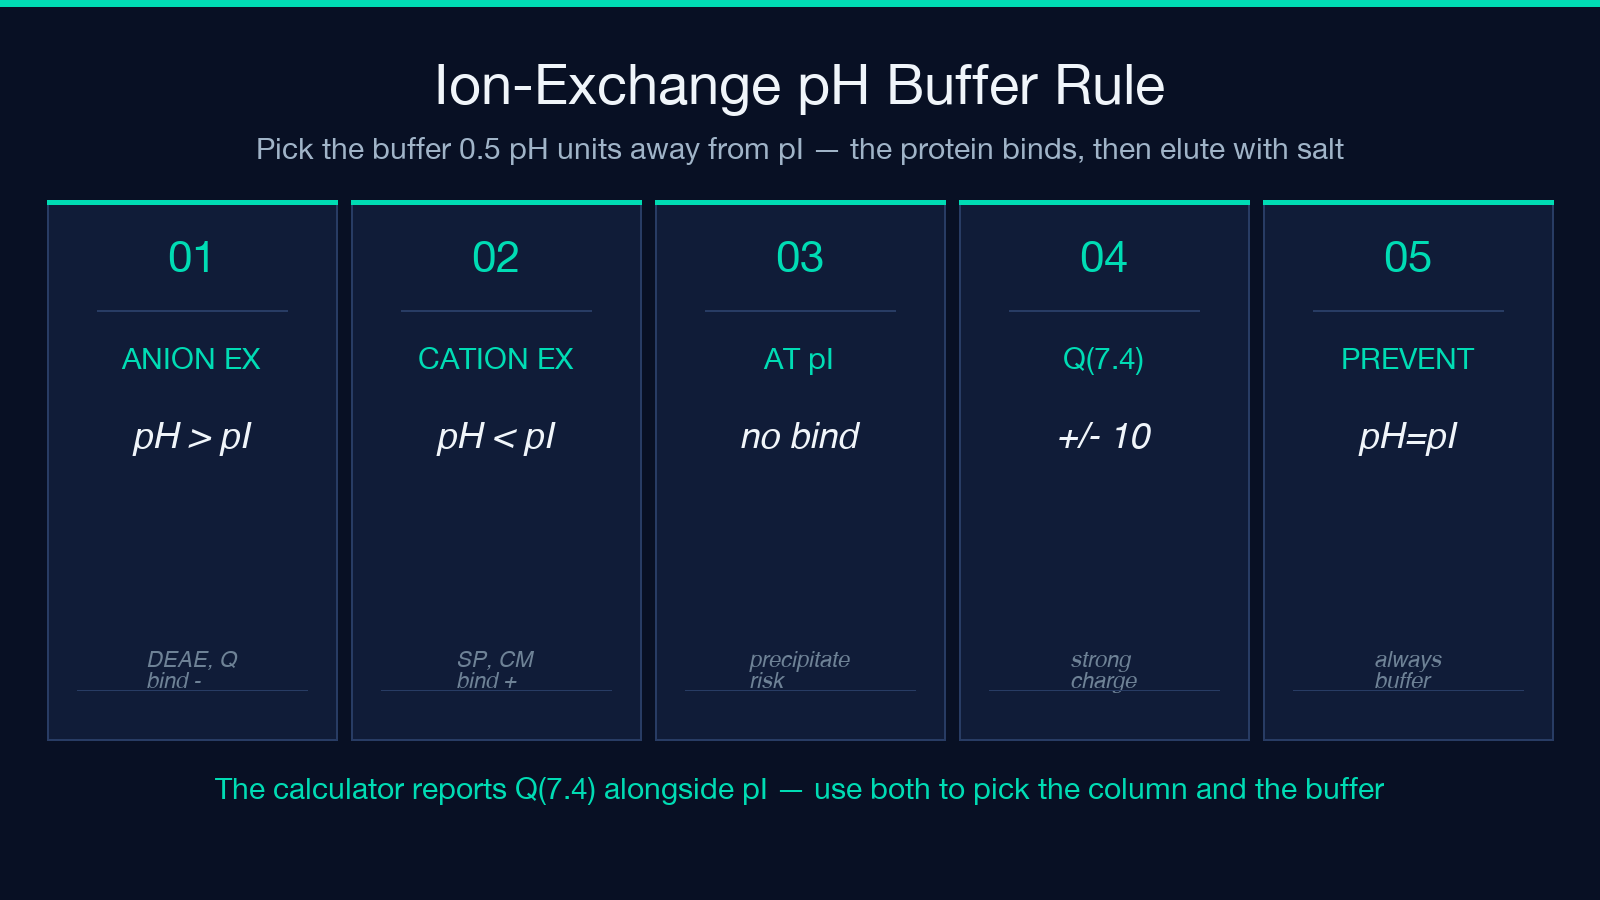
- 阴离子交换(DEAE、Q):在 pI 以上 0.5 个 pH 单位结合,用盐梯度洗脱。蛋白带净负电,结合得牢。
- 阳离子交换(SP、CM):在 pI 以下 0.5 个 pH 单位结合,用盐梯度洗脱。蛋白带净正电,结合得牢。
- pH 等于 pI 时:蛋白净电荷为零,两根柱子都不结合,还可能析出。任何离子交换步骤,缓冲液 pH 至少离 pI 0.5 个单位。
有了 Q(7.4) 的输出,缓冲液 pH 可以直接从预测的电荷曲线上读,不用试错。
用残基质量算平均分子量
分子量求和用的是标准 ProtParam 残基质量再加上水(18.015 Da),做法与 Biopython 的 ProteinAnalysis.molecular_weight() 一致。计算器不对同位素组成做平均,每个残基都取标准残基表里的单同位素平均质量。所以报出来的 MW 是平均分子量,不是高分辨质谱上看到的单同位素分子量。
多数实验规划用途(凝胶电泳、选型层析柱、浓度换算)要的就是平均分子量。做质谱解析时,改用 ExPASy 的 ProtParam 或 Biopython 的 ProteinAnalysis.molecular_weight(),打开单同位素选项,再拿来对比。
带电残基组成输出(每种可电离残基的个数)还能量身挑 IEF 胶条的 pH 范围:30 个 Lys 加 25 个 Arg 的蛋白,pI 平台宽,落在 pH 10.5 附近,选 pH 9 到 11 的胶条;20 个 Glu 加 15 个 Asp 的蛋白平台在 pH 4.5 附近,pH 3 到 5 的胶条才对。
酸碱性判读,以及它的局限
计算器按 pI 把蛋白标成「酸性」「碱性」或「中性」:
- pI 小于 7.0:酸性
- pI 大于 7.0:碱性
- pI 等于 7.0:中性
这个标签很粗:文献里大多数蛋白都落在 pH 7 这条线的两侧,「中性」那一格几乎没人。想分得细一点,就看 Q(7.4) 这个读数:Q(7.4) 大于 +5 的蛋白在生理 pH 下强碱性,Q(7.4) 小于 -5 的强酸性,中间的算温和。pI 和 Q(7.4) 两个值合起来,蛋白在整个生理 pH 范围内的电荷行为就清楚了。
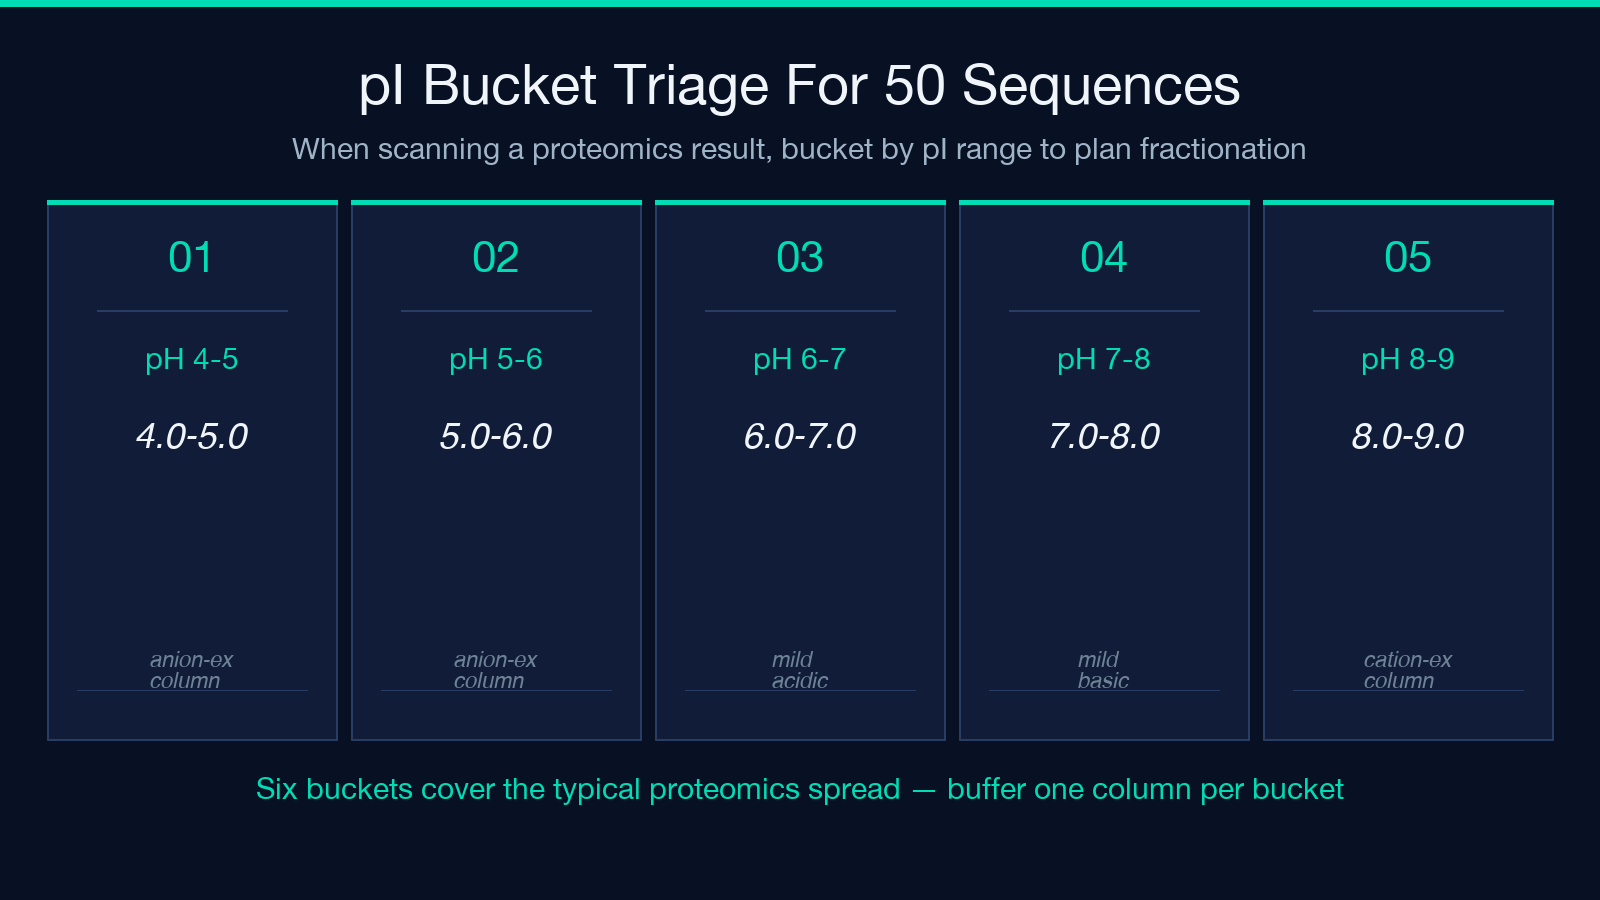
这个标签最有用的时候是扫一眼分类:从一项蛋白质组学研究里拿到 50 条序列,要按离子交换分级分桶,酸碱性判读加上 pI 分档(pH 4-5, 5-6, 6-7, 7-8, 8-9, 9-10)就够规划柱策略了。
什么时候该用它,什么时候不该
该用的时候:
- 手上的氨基酸序列是干净的(没有未知残基,没有非标准修饰)。
- 需要为实验规划快速拿一个理论 pI(柱缓冲液、IEF 胶条、2D 胶的 pH 范围)。
- 想要一个与 Biopython 等价的答案,又不想装一套 Python 环境。
- 在比较多个序列变体,只需要相对 pI 位移,不需要可发论文的绝对值。
不该用的时候:
- 蛋白有改变可电离基团的翻译后修饰(磷酸化、乙酰化、糖基化)。PTM 不在建模范围内。
- 折叠态带来了 pKa 偏移:埋在疏水口袋里的 His,pKa 相对 Bjellqvist 集能偏 1 到 2 个 pH 单位。计算器假设所有残基完全暴露于溶剂。
- 你需要可发论文的四位小数绝对 pI。直接跑 ExPASy Compute pI 或 Biopython,并引用该工具。
最后收一句:单个替换确实能把 pI 挪动整整一个 pH 单位,前提是它改动了收敛点的电荷平衡。多数替换只动 0.1 到 0.3,而这恰好是简化 Bjellqvist 集最准的区间。规划离子交换步骤时,计算器的输出比教科书上的经验法则可靠;排查 2D 胶糊掉的原因时,逐个残基的拆解会告诉你哪个替换是元凶。
想深入蛋白质电荷分析,可以看 Bjellqvist 1993 年推导 pKa 的论文 和 Gasteiger 2003 年的 ExPASy 工具综述。要在自己的序列上跑同样的计算,去 蛋白质等电点计算器(pI);想再看看别的分子生物学实验计算器,逛一逛 Elysia Tools 的 Education 分类。

Pingback: Protein Isoelectric Point Calculator Field Guide: When Three pKa Values Decide Whether Your Protein Lands on the IEF Strip - COSESAI